Detección de glucosa con un biosensor de fabricación propia 4/5 - Cinética de Michaelis-Menten
Este capítulo forma parte de la serie "Detección de glucosa con un biosensor de fabricación propia basado en glucosa oxidasa". En este capítulo se discute la teoría de Michaelis-Menten y su importancia para los biosensores. La última sección trata del diagrama de Lineweaver-Burk.
Constante de Michaelis-Menten
Para caracterizar los biosensores, la constante de Michaelis-Menten es un factor importante. Para entender por qué es importante y de dónde deriva hay que comprender las observaciones y teorías de Michaelis-Menten. Este modelo sigue siendo el más utilizado para la cinética enzimática. Una enzima E es un catalizador que convierte su sustrato S, un término para el reactivo convertido por la enzima, en el producto P o productos. Para llevar a cabo una reacción selectiva de sustrato, el sustrato y la enzima tienen que formar un complejo ES. Se puede suponer que la concentración de ES está en un equilibrio dinámico con la enzima E y el sustrato S. El paso limitante en esta reacción es la conversión de ES en E y P y normalmente el equilibrio del lado del producto es muy fuerte. La reacción enzimática se expresa mediante:

Según la ley masa-acción la constante de disociación KS del complejo es:
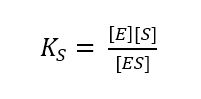
Mientras que la reacción del complejo al producto puede tratarse como irreversible, la cinética de la formación del ES es rápida en comparación con la formación del producto y es reversible. Como resultado, la velocidad de la reacción vR es proporcional a la concentración del complejo enzima-sustrato según
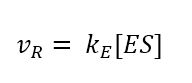
La concentración de ES depende de la concentración de enzima y de sustrato. Si tenemos una cantidad fija de solución enzimática y observamos la velocidad al aumentar la concentración de sustrato, se observa una curva de saturación (véase la figura 3.1). Esto ocurre porque al aumentar la concentración de sustrato más E se convierte en ES. En algún momento, todo el E se convierte en ES y la adición adicional de sustrato no producirá más ES.
Una analogía que funciona bien es un supermercado con todas las cajas abiertas. Si hay 5 cajas y 2 clientes, 2 clientes pueden pagar en 30 s. Si se aumenta el número de clientes a 5, 5 clientes pueden pagar en 30 s, es decir, aumenta la velocidad vR (clientes retirados por tiempo). Más clientes, por ejemplo 10, no aumentarán la vR, pero se formarán colas en las cajas.
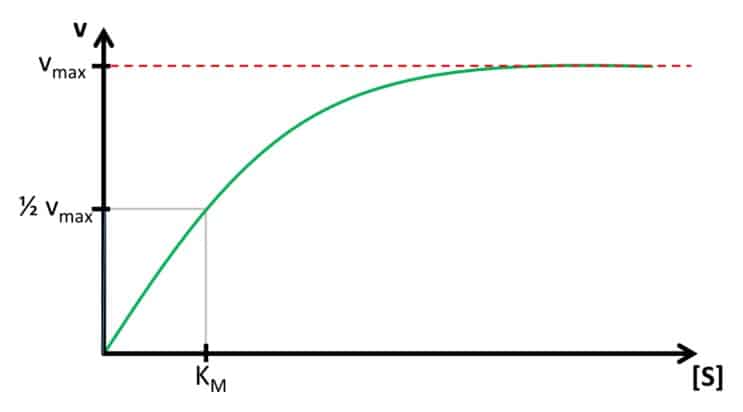
La velocidad máxima vmax y la concentración más baja con vmax ([S]max) son dos parámetros que contienen información importante. La velocidad de reacción o velocidad v determina la frecuencia con la que el S se convierte en P y, por tanto, la frecuencia con la que se transfieren electrones a la enzima. Dado que estos electrones serán directa o indirectamente donados o aceptados por el electrodo, la velocidad de reacción durante la medición está representada por la corriente medida. Esto significa que cuanto mayor sea vmax, mayor será la corriente por concentración, lo que también se conoce como sensibilidad. [S]max determina el intervalo de concentración en el que la corriente depende de [S]. Si [S]max es muy alto, se puede detectar un amplio rango de concentraciones con esta enzima. Si una enzima está inmovilizada, [S]max y vmax pueden cambiar en comparación con sus propiedades durante la difusión libre.
Sin embargo, es muy difícil determinar estos importantes parámetros. Este problema puede simplificarse introduciendo la constante de Michaelis-MentenKM. En lugar de utilizar vmax, que es difícil de determinar debido a la forma de la saturación, se utiliza como referencia 0,5vmax. Según la relación entre ES y vR discutida en el último párrafo, la mitad de la cantidad total de enzima está presente como ES si v es 0,5vmax. La concentración de [S] para 0,5 vmax es la constante de Michaelis-MentenKM, como puede verse en la figura 3.1. La constante de Michaelis-MentenKM indica el grado de afinidad entre el sustrato S y la enzima E. Además, el valor de KM y v es el valor de la constante de Michaelis-Menten KM. Además, el valor deKM y vmax puede determinarse mediante el diagrama de Lineweaver-Burke, que se explica en el párrafo siguiente.
Determinar KM y vmax
Después de aprender por quéKM es importante otra propiedad interesante de la constante de Michaelis-MentenKM se puede descubrir resolviendo la ecuación 3.2 en
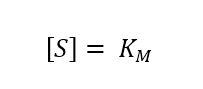
Como sabemos por el capítulo anterior, en este punto la mitad de la cantidad total de enzimaEt se convierte en ES:
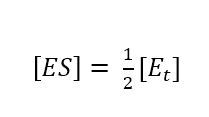
Si insertamos las ecuaciones 3.4 y 3.5 en la ecuación 3.2, descubrimos:

La constante compleja KS para una enzima es la constante de Michaelis-MentenKM, porque una constante será la misma para este caso especial y para un caso general. Para encontrar una forma de medirKM, tenemos que ver la ecuación 3.2 en un caso general, es decir, para cualquier valor de [S], y conectarla con la corriente medida. Como sabemos por el capítulo anterior, la corriente depende de la velocidad de reacción vR. De la ecuación 3.3 ya conocemos la conexión entre vR y [S] y podemos deducir la conexión con la más interesante vmax, porque vmax se alcanza cuando toda la enzima se convierte en ES.

La ecuación 3.7 muestra esta conclusión. Utilizando la ecuación 3.6 con la 3.2 se llega a una nueva expresión para [ES] (ecuación 3.8).

Nuestro objetivo es una expresión con todos los parámetros que nos interesan y los que podemos determinar con una medición. La ecuación 3.8 no incluye vR y la necesitamos para establecer una conexión con nuestra medición, porque está correlacionada con la corriente. El vR que falta puede introducirse sustituyendo [ES] en la ecuación 3.3 por la ecuación 3.8.

Durante una medida amperométrica podemos controlar la concentración de sustrato [S] y medimos la vR como la corriente I. Los valores desconocidos de la ecuación 3.9 son los dos valores que queremos evaluar: vmax yKM. A los científicos les gusta convertir una ecuación en una forma lineal, porque esto permite a menudo una buena determinación de los parámetros que faltan mediante un ajuste lineal. Si se invierte la ecuación 3.9, se puede obtener una forma lineal:

La ecuación 3.10 se conoce como ecuación de Lineweaver-Burk. Según la ecuación de Lineweaver-Burk, un gráfico de 1/vR frente a 1/[S] debe dar una línea con la intersección 1/vmax y la pendiente KM/vmax. Este gráfico se denomina gráfico de Lineweaver-Burk, pero en un experimento amperométrico se representa 1/I frente a 1/[S] (véase la figura 3.2).

El conocimiento de la constante de Michaelis-MentenKM tiene otra ventaja. En la figura 3.1 es visible que la curva de saturación al principio se aproxima a una relación lineal. Normalmente, las mediciones cuantitativas deben situarse en este segmento lineal de la curva. La curva puede considerarse lineal hasta una concentración deKM. Si se conoce la constante de Michaelis-Menten, también se conoce el rango lineal del biosensor. Los valores típicos deKM están entre 10-2 - 10-6 mol/l.