Détection du glucose à l'aide d'un biocapteur auto-fabriqué 4/5 - Cinétique de Michaelis-Menten
Ce chapitre fait partie de la série "Détection du glucose à l'aide d'un biocapteur autodidacte basé sur la glucose oxydase". Dans ce chapitre, nous discutons de la théorie de Michaelis-Menten et de son importance pour les biocapteurs. La dernière section traite du diagramme de Lineweaver-Burk.
Constante de Michaelis-Menten
Pour caractériser les biocapteurs, la constante de Michaelis-Menten est un facteur important. Pour comprendre pourquoi elle est importante et d'où elle provient, il faut comprendre les observations et les théories de Michaelis-Menten. Ce modèle est toujours le plus utilisé pour la cinétique enzymatique. Une enzyme E est un catalyseur qui convertit son substrat S, terme désignant le réactif converti par l'enzyme, en produit P ou en produits. Pour effectuer une réaction sélective du substrat, le substrat et l'enzyme doivent former un complexe ES. On peut supposer que la concentration d'ES est en équilibre dynamique avec l'enzyme E et le substrat S. L'étape limitante de cette réaction est la conversion d'ES en E et P et, en général, l'équilibre du côté du produit est très fort. La réaction enzymatique est exprimée par :

Selon la loi d'action de masse, la constante de dissociation KS du complexe est :
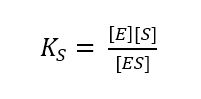
Alors que la réaction du complexe au produit peut être considérée comme irréversible, la cinétique de la formation de l'ES est rapide par rapport à la formation du produit et est réversible. En conséquence, la vitesse de la réaction vR est proportionnelle à la concentration du complexe enzyme-substrat selon la formule
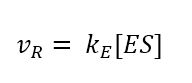
La concentration de l'ES dépend de la concentration de l'enzyme et du substrat. Si nous disposons d'une quantité fixe de solution enzymatique et que nous observons la vitesse en augmentant la concentration en substrat, une courbe de saturation est observée (voir figure 3.1). Cela est dû au fait qu'avec l'augmentation de la concentration en substrat, davantage d'E est converti en ES. À un certain moment, tout E est converti en ES et l'ajout supplémentaire de substrat ne produira pas plus d'ES.
Une analogie qui fonctionne bien est celle d'un supermarché dont toutes les caisses sont ouvertes. S'il y a 5 caisses et 2 clients, 2 clients peuvent payer en 30 secondes. Si le nombre de clients est porté à 5, 5 clients peuvent payer en 30 secondes, c'est-à-dire que la vitesse vR (clients passant à la caisse par temps) est augmentée. Un plus grand nombre de clients, par exemple 10, n'augmentera pas la vitesse vR, mais des files d'attente se formeront aux caisses.
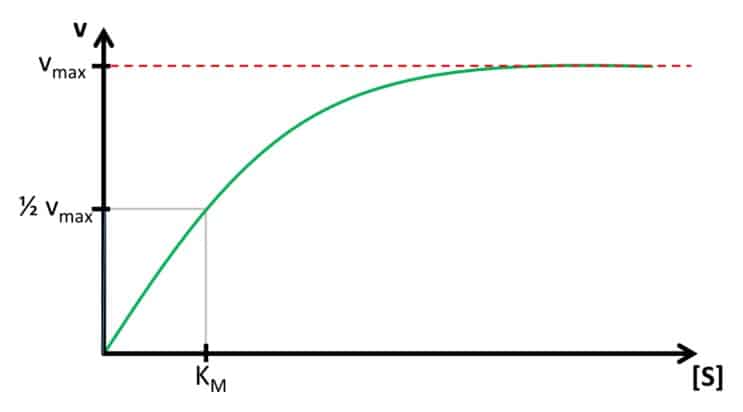
La vitesse maximale vmax et la concentration la plus faible avec vmax ([S]max) sont deux paramètres qui contiennent des informations importantes. La vitesse de réaction ou vitesse v détermine la fréquence à laquelle S est converti en P et donc la fréquence à laquelle les électrons sont transférés à l'enzyme. Comme ces électrons seront directement ou indirectement donnés ou acceptés par l'électrode, la vitesse de réaction pendant la mesure est représentée par le courant mesuré. Cela signifie que plus vmax est élevé, plus le courant par concentration est élevé, ce qui est également connu sous le nom de sensibilité. [S]max détermine la plage de concentration dans laquelle le courant dépend de [S]. Si [S]max est très élevé, une large gamme de concentrations peut être détectée avec cette enzyme. Si une enzyme est immobilisée, [S]max et vmax peuvent changer par rapport à leurs propriétés pendant la diffusion libre.
Cependant, il est très difficile de déterminer ces paramètres importants. Ce problème peut être simplifié en introduisant la constante de Michaelis-MentenKM. Au lieu d'utiliser vmax, qui est difficile à déterminer en raison de la forme de la saturation, on utilise 0,5vmax comme référence. Selon la relation entre ES et vR discutée dans le dernier paragraphe, la moitié de la quantité totale de l'enzyme est présente sous forme d'ES si v est de 0,5vmax. La concentration de [S] pour 0,5vmax est la constante de Michaelis-MentenKM, comme le montre la figure 3.1. La constante de Michaelis-MentenKM indique le degré d'affinité entre le substrat S et l'enzyme E. En outre, la valeur deKM et de vmax peut être déterminée à l'aide du diagramme de Lineweaver-Burke, qui est expliqué dans le paragraphe suivant.
Déterminer le KM et le vmax
Après avoir appris pourquoi leKM est important, une autre propriété intéressante du constant de Michaelis-MentenKM peut être découverte en résolvant l'équation 3.2 à
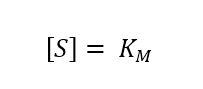
Comme nous l'avons vu au chapitre précédent, à ce stade, la moitié de la quantité totale d'enzymeEt est convertie en ES :
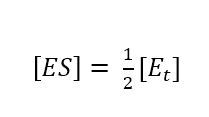
Si nous insérons les équations 3.4 et 3.5 dans l'équation 3.2, nous découvrons :

La constante complexe KS pour une enzyme est la constante de Michaelis-MentenKM, car une constante sera la même pour ce cas particulier et pour un cas général. Pour trouver un moyen de mesurerKM, nous devons examiner l'équation 3.2 dans un cas général, c'est-à-dire pour n'importe quelle valeur de [S], et la relier au courant mesuré. Comme nous l'avons vu dans le chapitre précédent, le courant dépend de la vitesse de réaction vR. Grâce à l'équation 3.3, nous connaissons déjà le lien entre vR et [S] et nous pouvons déduire le lien avec le vmax, plus intéressant, car le vmax est atteint lorsque toute l'enzyme est convertie en ES.

L'équation 3.7 illustre cette conclusion. L'utilisation de l'équation 3.6 avec 3.2 conduit à une nouvelle expression pour [ES] (équation 3.8).

Notre objectif est d'obtenir une expression contenant tous les paramètres qui nous intéressent et ceux que nous pouvons déterminer à l'aide d'une mesure. L'équation 3.8 n'inclut pas vR et nous en avons besoin pour faire le lien avec notre mesure, car elle est corrélée au courant. L'absence de vR peut être introduite en remplaçant [ES] dans l'équation 3.3 par l'équation 3.8.

Lors d'une mesure ampérométrique, nous pouvons contrôler la concentration du substrat [S] et nous mesurons la vR comme le courant I. Les valeurs inconnues de l'équation 3.9 sont les deux valeurs que nous voulons évaluer : vmax etKM. Les scientifiques aiment transformer une équation en une forme linéaire, car cela permet souvent de bien déterminer les paramètres manquants grâce à un ajustement linéaire. En inversant l'équation 3.9, on obtient une forme linéaire :

L'équation 3.10 est connue sous le nom d'équation de Lineweaver-Burk. Selon l'équation de Lineweaver-Burk, un diagramme de 1/vR en fonction de 1/[S] devrait donner une ligne avec l'intersection 1/vmax et la pente KM/vmax. Un tel diagramme est appelé diagramme de Lineweaver-Burk, mais dans une expérience ampérométrique, 1/I est diagramme en fonction de 1/[S] (voir figure 3.2).

La connaissance de la constante de Michaelis-MentenKM présente un autre avantage. Dans la figure 3.1, on peut voir que la courbe de saturation au début est proche d'une relation linéaire. En général, les mesures quantitatives doivent se situer dans ce segment linéaire de la courbe. La courbe peut être considérée comme linéaire jusqu'à une concentration deKM. Si la constante de Michaelis-Menten est connue, la plage linéaire du biocapteur l'est également. Les valeurs typiques deKM se situent entre 10-2 - 10-6 mol/l.