自作バイオセンサーによるグルコース検出 4/5 - ミカエリス・メンテン速度論
この章はシリーズ「グルコース酸化酵素に基づく自作バイオセンサーによるグルコースの検出」の一部です。この章では、ミカエリス・メンテン理論とバイオセンサーにおけるその重要性について述べる。最後の章ではLineweaver-Burkプロットを扱う。
ミカエリス・メンテン定数
バイオセンサーを特徴づけるために、ミカエリス・メンテン定数は重要な要素です。この定数がなぜ重要なのか、またどこから来ているのかを理解するには、ミカエリス-メンテンの観察と理論を理解する必要がある。このモデルは現在でも酵素速度論で最も使われているものである。酵素Eは、基質S(酵素によって変換される試薬の用語)を生成物Pまたは生成物に変換する触媒である。基質選択的反応を行うためには、基質と酵素は複合体ESを形成しなければならない。この反応の限界段階は、ESからEとPへの変換であり、通常、生成物側の平衡は非常に強い。酵素反応は次式で表される:

質量作用の法則によると、錯体の解離定数KSは次のようになります:
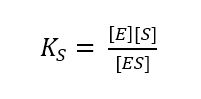
錯体から生成物への反応は不可逆的に扱えますが、ES の形成の速度論は生成物の形成に比べ速く、可逆的です。その結果、反応速度vRは酵素-基質複合体の濃度に比例し、次式に従う。
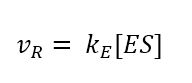
ES の濃度は酵素と基質の濃度に依存します。一定量の酵素溶液を用意し、基質濃度を増加させながら速度を観察すると、飽和曲線が観察される(図3.1参照)。これは、基質濃度が高くなるにつれて、より多くのEがESに変換されるために起こる。ある時点で、すべてのEがESに変換され、それ以上基質を加えてもESは増えない。
よく機能する例えは、すべてのレジが開いているスーパーマーケットです。レジが5つで客が2人の場合、2人の客が30秒間で支払いを済ませることができる。客の数を5人に増やすと、5人の客が30秒間で支払いを済ませることができる。客数が10人など増えてもvRは増えないが、レジには行列ができる。
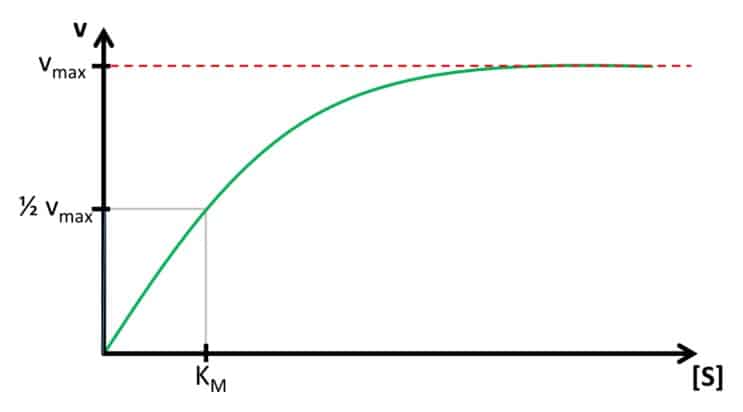
最大速度vmaxとvmaxを持つ最低濃度([S]max)は重要な情報を含む 2 つのパラメータです。反応速度または速度vは、SがPに変換される頻度を決定し、したがって酵素に電子が移動する頻度を決定する。これらの電子は直接または間接的に電極に供与または受容されるため、測定中の反応速度は測定電流で表される。つまり、vmaxが高いほど濃度あたりの電流が高くなり、感度とも呼ばれます。[S]maxは、電流が[S]に依存する濃度範囲を決定します。S]maxが非常に高ければ、この酵素で検出できる濃度範囲は広い。酵素が固定化されている場合、[S]maxと vmaxは自由拡散時の性質と比較して変化する可能性があります。
しかし、これらの重要なパラメータを決定するのは非常に困難です。この問題は、ミカエリス・メンテン定数KMを導入することで簡略化できる。飽和の形状のために決定が難しいvmaxを使用する代わりに、0.5vmaxを基準として使用する。前項で述べたESとvRの関係によれば、vが0.5vmaxの場合、全酵素量の半分がESとして存在する。0.5vmaxにおける[S]の濃度は、図3.1に見えるように、ミカエリス-メンテン定数KMである。ミカエリス-メンテン定数KMは、基質Sと酵素Eとの親和性の高さを示す。さらに、KMと vmaxの値はLineweaver-Burke-plotを使って求めることができる。
KM と vmax の決定
なぜKMが重要なのかを学んだ後、ミカエリス・メンテン定数KMのもう一つの興味深い性質を、式 3.2 を解くことで発見することができます。
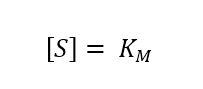
前章で述べたように、この時点で全酵素量Etの半分が ES に変換されます:
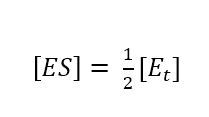
式 3.2 に式 3.4 と 3.5 を挿入すると、次のことがわかります:

ある酵素の複合定数KSはミカエリス-メンテン定数KM である。KMを測定する方法を見つけるには、一般的な場合、つまり[S]がどのような値であっても、式3.2に注目し、それを測定された電流に結びつける必要がある。前章で述べたように、電流は反応速度vRに依存する。式3.3から、我々はすでにvRと[S]の関係を知っており、より興味深いvmaxとの関係を差し引くことができる。なぜなら、vmaxはすべての酵素がESに変換されたときに到達するからである。

式 3.7 はこの結論を示しています。式 3.6 と 3.2 を用いると、[ES] の新しい式が導かれます (式 3.8)。

我々のゴールは、興味のあるパラメータと測定で決定できるパラメータをすべて含む式である。式3.8にはvRが含まれておらず、電流と相関があるため、測定に接続するためにvRが必要である。欠けているvRは、式3.3の[ES]を式3.8に代入することで導入できる。

アンペロメトリック測定では、基質[S]の濃度を制御することができ、vRを電流 I として測定します。式3.9の未知の値は、評価したい2つの値、すなわちvmaxと KMである。科学者は方程式を線形にするのが好きである。なぜなら、そうすることで、多くの場合、線形フィットを介して不足しているパラメータをうまく決定することができるからである。式3.9を反転させると、一次式が得られる:

式 3.10 は Lineweaver-Burk 方程式として知られています。Lineweaver-Burk式によれば、1/vR対1/[S]のプロットは、交点1/vmax、傾きKM/vmaxの直線を描くはずである。このようなプロットは Lineweaver-Burk プロットと呼ばれますが、アンペロメトリック実験では 1/I は 1/[S] に対してプロットされます(図 3.2 参照)。

ミカエリス・メンテン定数KMの知識にはもう一つ利点があります。図3.1では、冒頭の飽和曲線が直線関係に近いことがわかる。通常、定量的な測定は、この曲線 の線形セグメントで行う必要がある。この曲線はKMの濃度まで直線として扱うことができる。ミカエリス・メンテン定数が既知であれば、バイオセンサの直線範囲も既知である。KMの典型的な値は10-2~10-6 mol/lである。